В научно-популярном пространстве и социальных сетях регулярно появляются концепции, обещающие объяснить происхождение хронических болезней одной универсальной поломкой. Особую популярность завоевал вирусный нарратив, выстраивающий пугающую причинно-следственную цепочку: якобы в результате окислительного стресса рецепторы инсулина безвозвратно окисляются и выключаются, клетка лишается доступа к глюкозе, головной мозг начинает погибать от голода, организм отвечает на это неукротимой тягой к пище, а вырабатывающийся в гигантских количествах инсулин стимулирует деление клеток и вызывает рак.
В этой схеме подлинные термины молекулярной биологии сплетены с грубыми фактическими искажениями. Сопоставление вирусного тезиса с рецензируемыми данными физиологии, биохимии и клинической эндокринологии демонстрирует несостоятельность каждого звена этой цепочки.
Физиология редокс-сигналинга: окисление как язык клетки
Ключевая ошибка мифа заключается в отождествлении любого окислительного процесса с необратимым разрушением молекулярных структур. В живой клетке обратимые окислительно-восстановительные реакции (редокс-сигналинг) служат базовым инструментом внутриклеточной коммуникации.
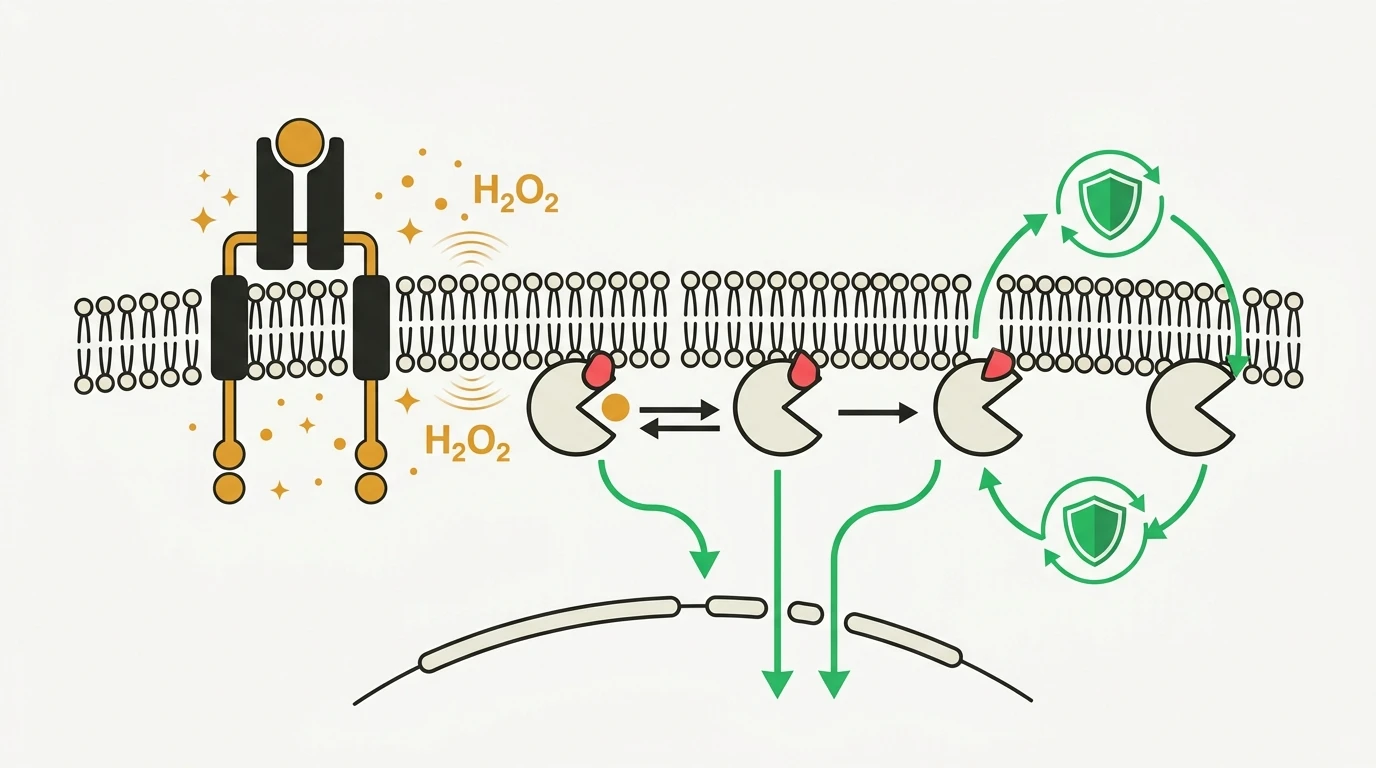
Рецептор инсулина представляет собой сложный трансмембранный белок из семейства тирозинкиназ. Связывание молекулы инсулина с наружной субъединицей рецептора активирует его внутреннюю ферментативную часть, запуская фосфорилирование сигнальных белков. В этот момент мембранные ферменты клетки кратковременно и строго локально генерируют небольшое количество перекиси водорода (H2O2).
Эта эндогенная перекись водорода необходима: она выступает в роли вторичного мессенджера, окисляя тиоловые группы цистеиновых остатков в активных центрах протеинтирозинфосфатаз — ферментов, призванных мгновенно гасить гормональный сигнал. Окисление временно деактивирует фосфатазы, позволяя сигналу инсулина распространиться вглубь клетки и запустить каскад утилизации глюкозы.
Как только задача выполнена, клеточные антиоксидантные системы (в частности, тиоредоксин и пероксиредоксины) восстанавливают окисленные цистеины, возвращая ферменты в рабочее состояние. Окисление в сигнальном каскаде инсулина — это не патологическая авария, а штатный, высоко координированный механизм регуляции. Путать физиологический редокс-сигнал с термическим или токсическим ожогом белка — грубейшая ошибка.
Как на самом деле питается мозг: независимость от инсулина
Утверждение о том, что при нарушении работы инсулиновых рецепторов головной мозг лишается глюкозы и испытывает голодную кому, противоречит фундаментальным основам анатомии и физиологии человека.
Транспорт глюкозы в ткани регулируется семейством белковых транспортеров (GLUT), обладающих разной тканевой специфичностью:
- Гематоэнцефалический барьер и транспортер GLUT1. Проникновение глюкозы из плазмы крови через эндотелий мозговых капилляров и глиальные клетки обеспечивается транспортером GLUT1. Этот белок работает независимо от инсулина: интенсивность переноса сахара подчиняется исключительно градиенту концентрации глюкозы между кровью и нервной тканью.
- Нейроны и транспортер GLUT3. Непосредственный захват глюкозы нейронами головного мозга осуществляется с помощью транспортера GLUT3. Он также функционирует без участия инсулина и обладает высочайшим сродством к молекуле глюкозы, гарантируя полноценное снабжение нейронов энергией даже при значительном падении гликемии.
Инсулинзависимый транспортер GLUT4 экспрессируется главным образом в клетках скелетной мускулатуры, миокарда и жировой ткани. Именно там инсулин необходим для перемещения переносчиков на клеточную мембрану. Мозг как орган наивысшего эволюционного приоритета изолирован от периферических колебаний инсулина и никогда не ставится в зависимость от периферической резистентности к этому гормону для базового энергетического выживания.
Инсулин и регуляция аппетита: истинные механизмы сытости
Не менее абсурден тезис о том, что высокий уровень инсулина провоцирует мучительный голод. В нейроэндокринологии доказано прямо противоположное действие гормона.
В центральной нервной системе, в структурах аркуатного (дугообразного) ядра гипоталамуса, инсулин выступает в качестве анорексигенного фактора — вещества, подавляющего потребность в пище:
- Инсулин стимулирует нейроны, экспрессирующие проопиомеланокортин (POMC), что активирует сигнал насыщения.
- Одновременно инсулин угнетает активность нейронов, вырабатывающих нейропептид Y (NPY) и агути-подобный пептид (AgRP), которые отвечают за запуск пищедобывающего поведения и поиск калорий.
Внезапные приступы голода при метаболических сбоях вызваны не инсулиновым голоданием мозга, а другими факторами: снижением чувствительности к лептину (главному гормону сытости, вырабатываемому жировой тканью) и реактивными колебаниями сахара в крови после употребления рафинированных углеводов.
Инсулин и онкогенез: промотор, а не мутагенный инициатор
В онкологии процесс формирования опухоли строго разделяют на инициацию (возникновение мутаций в геноме клетки) и промоцию (создание условий для выживания и бесконтрольного размножения трансформированных клеток).
Инсулин и инсулиноподобный фактор роста 1 (IGF-1) обладают анаболическими и митогенными свойствами: они стимулируют белковый синтез и деление клеток, а также тормозят апоптоз (запрограммированную клеточную смерть). При наличии уже сформировавшихся предраковых или злокачественных клеток хроническая выраженная гиперинсулинемия действительно способна выступать в качестве неблагоприятного метаболического фона, облегчающего прогрессирование ряда опухолей.
Однако инсулин сам по себе не является мутагеном или канцерогеном. Он не повреждает структуру ДНК, не нарушает хромосомный аппарат и не инициирует злокачественную трансформацию здоровой клетки. Связывать происхождение рака исключительно с инсулином — значит игнорировать ключевую роль генетических поломок, канцерогенов внешней среды, вирусных агентов и сбоев иммунного надзора.
- Окисление остатков цистеина в рецепторных белках — обратимый элемент нормального редокс-сигналинга клетки, а не ее поломка.
- Поступление глюкозы в головной мозг происходит через инсулиннезависимые переносчики GLUT1 и GLUT3.
- Инсулин в гипоталамусе подавляет аппетит, а не провоцирует приступы неконтролируемого голода.
- Инсулин стимулирует клеточный рост как фактор метаболизма, но не инициирует мутации ДНК, вызывающие рак.
Попытки свести патогенез метаболического синдрома и онкологических заболеваний к примитивной схеме «окисления рецепторов» не имеют научной основы. Доказанная профилактика инсулинорезистентности заключается не в покупке БАД с антиоксидантами, а в рациональном питании с контролем простых сахаров, достаточной мышечной активности и поддержании здорового процента жира в организме.